LL-37(カテリシジン抗菌ペプチド)
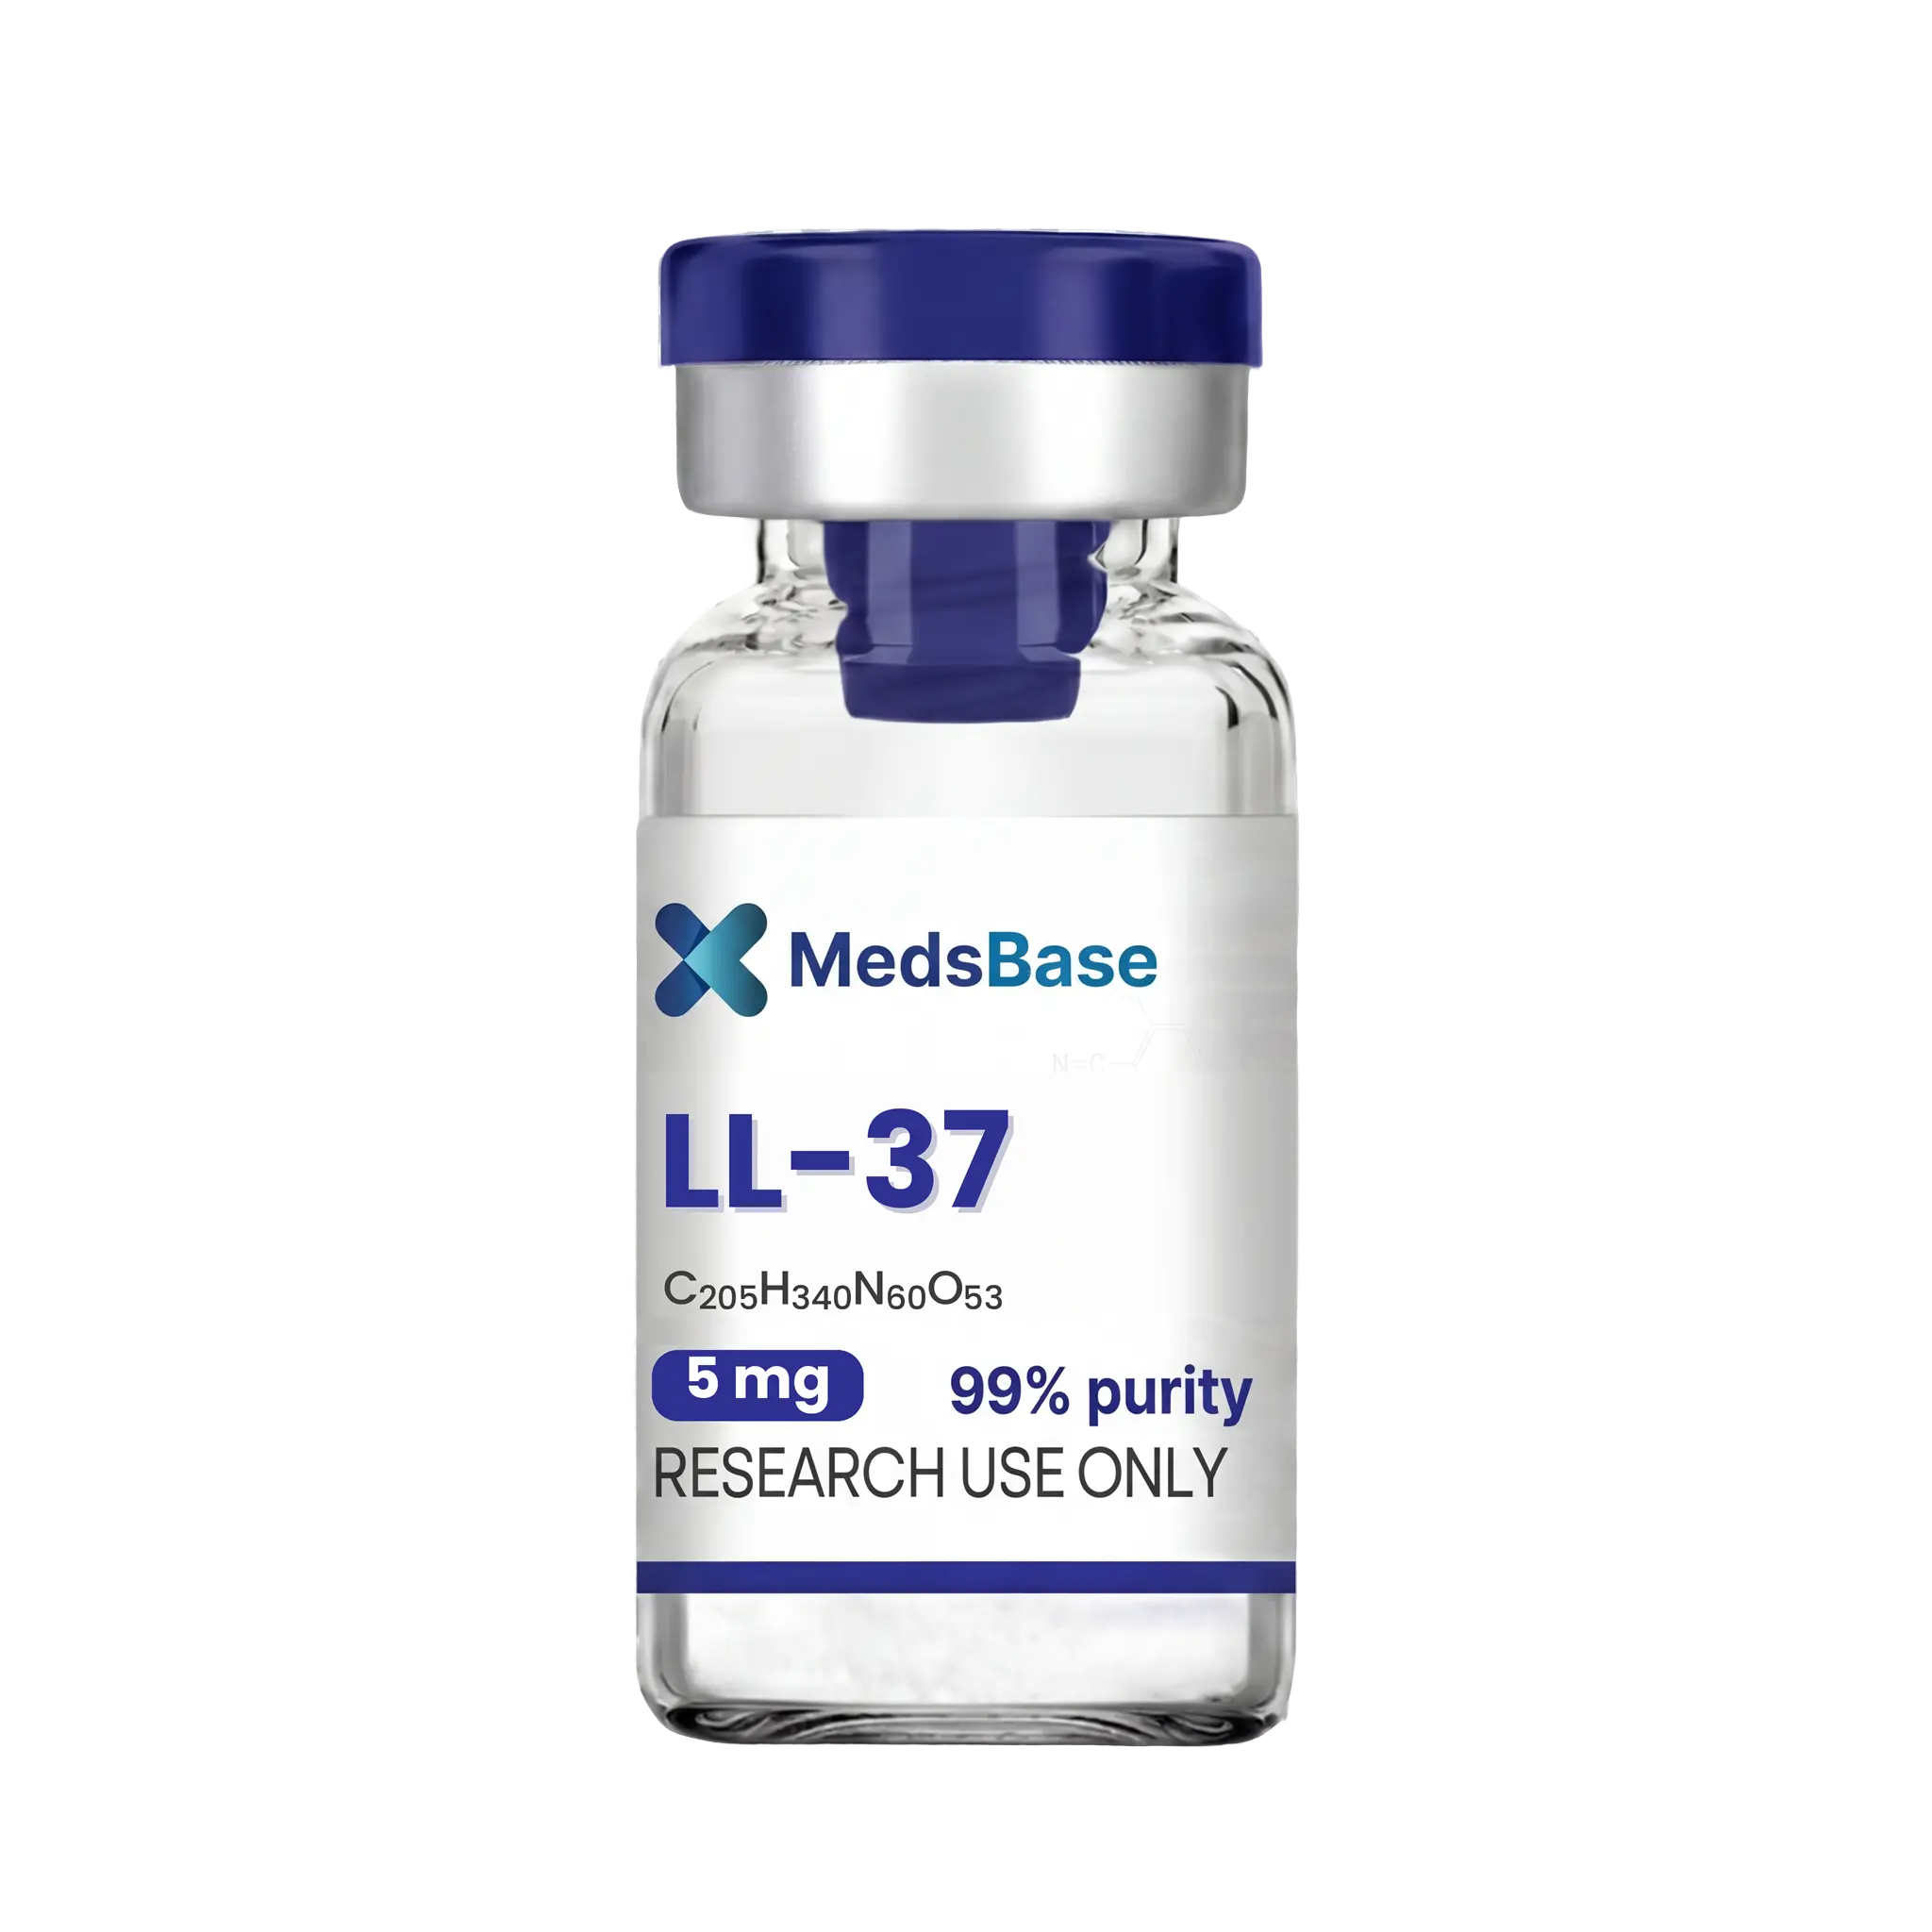
✅ ヒト唯一のカテリシジン抗菌ペプチド(37アミノ酸)
✅ 両親媒性αヘリックス;正味電荷+6
✅ 広域スペクトル:グラム陽性菌、グラム陰性菌、エンベロープウイルス、バイオフィルム
✅ FPRL1およびLPS中和を介した免疫調節作用
✅ 抗菌薬耐性、創傷治癒、乾癬、腫瘍学で研究
LL-37 合成ペプチド化合物を含みます。
✓ 医学的監修: Morgan Ellis — 医薬品研究者 · 8年の経験 · 最終監修日:2026年5月
クイックアンサー — LL-37とは何ですか?
LL-37 (also called Cathelicidin Antimicrobial Peptide, CAP-18, or FALL-39) is a 37-amino-acid amphipathic α-helical host-defense peptide — the only human cathelicidin. It is released by proteinase-3 cleavage from the inactive proform (hCAP-18) and combines direct broad-spectrum antimicrobial activity (against bacteria, fungi, enveloped viruses, and biofilms) with potent immunomodulatory effects: LPS neutralisation, chemotaxis of neutrophils/monocytes/T-cells, anti-biofilm action, and pro-angiogenic wound-healing signalling. LL-37 is studied across antimicrobial-resistance studies, wound-healing, atherosclerosis, psoriasis pathogenesis, and oncology. Supplied in 5 mg lyophilized vials.
📦 すべてのご注文は、当店の 再発送保証ポリシー — 万が一、20営業日以内に商品が届かない場合は、再発送いたします。
| 仕様 | 詳細 |
|---|---|
| CAS番号 | 154947-66-7 (LL-37 フリーベース) |
| タイプ | 37アミノ酸からなる両親媒性αヘリックスカチオン性抗菌宿主防御ペプチド;唯一のヒトカテリシジン(CAMP遺伝子産物);不活性前駆体hCAP-18のプロテイナーゼ3切断により放出される活性C末端ペプチド;また、CAP-18(18 kDa前駆体のC末端カテリシジン抗菌ペプチド)およびFALL-39(以前の配列決定でN末端のF残基を含む場合)とも呼ばれます。 |
| 分子式 | C205H340N60O53 |
| 分子量 | ~4,493.3 Da |
| 配列 | H-Leu-Leu-Gly-Asp-Phe-Phe-Arg-Lys-Ser-Lys-Glu-Lys-Ile-Gly-Lys-Glu-Phe-Lys-Arg-Ile-Val-Gln-Arg-Ile-Lys-Asp-Phe-Leu-Arg-Asn-Leu-Val-Pro-Arg-Thr-Glu-Ser-OH (LLGDFFRKSKEKIGKEFKRIVQRIKDFLRNLVPRTES) — 直鎖状37残基カチオン性ペプチド;中性pHで正味+6の電荷;脂質/膜環境で両親媒性αヘリックスに折りたたまれます。遊離N末端およびC末端;ジスルフィド結合なし、アシル化なし、PEG化なし。 |
| 形態 | 凍結乾燥粉末(白色〜微黄色) |
| 純度 | ≥99%(HPLC検証済み、COAはご要望に応じて提供) |
| 保管方法 | 凍結乾燥品:短期使用のストックは2~8 °C(冷蔵庫)、未開封バイアルの長期保存は−20 °Cで保管してください。再溶解後:2~8 °C、約14~28日以内にご使用ください。光から保護してください。凍結融解の繰り返しは避けてください。カチオン性抗菌ペプチドはプラスチック表面に吸着する可能性があります。ストックの保存や希釈には低吸着チューブ(シリコンコーティングまたはProtein LoBind)の使用をおすすめします。 |
| 溶解性 | 静菌水、滅菌水、または希酢酸(0.01~0.1%)に高い溶解性を示します。酸性から中性のpHで再溶解し、ストック溶液には高塩濃度や強塩基性の緩衝液を使用しないでください。両親媒性αヘリックスは高濃度で凝集する可能性があるため、使用直前に使用濃度に希釈してください。 |
LL-37とは何ですか?
LL-37 は、ヒトカテリシジン抗菌ペプチドhCAP-18のタンパク質分解切断により放出される活性型C末端37アミノ酸ペプチドであり、ヒトにおける唯一のカテリシジン遺伝子産物で、コードされているのは CAMP gene on chromosome 3. The peptide takes its name from its first two residues (Leu-Leu) and its length (37 residues). It belongs to the cathelicidin family of innate-immunity host-defense peptides found across most vertebrate lineages and represents the central effector molecule in the human cathelicidin arm of innate immunity, alongside the defensin family. Inactive hCAP-18 proform is produced in neutrophil granules, in epithelial surfaces (skin keratinocytes, respiratory and gut epithelium), and in lower amounts by macrophages, NK cells, mast cells, B-cells, and γδ T-cells. Activation occurs by proteinase-3 cleavage (in neutrophils) or by kallikrein-5/kallikrein-7 (in skin), liberating the bioactive 37-mer that adopts a strongly amphipathic α-helical conformation in membrane-mimetic environments. The peptide carries a +6 net positive charge at neutral pH, with cationic lysine and arginine residues concentrated on one face of the helix and hydrophobic leucine, phenylalanine, isoleucine, and valine residues on the opposing face — the canonical “amphipathic α-helix” architecture that enables selective interaction with negatively-charged microbial membranes. LL-37 combines two distinct host-defense modalities in a single peptide. Its 直接的な抗菌活性 は、グラム陽性菌(メチシリン耐性 S. aureus, 、MRSA)、グラム陰性菌( E. coli, K. pneumoniae, P. aeruginosa)、エンベロープウイルス(HSV-1、インフルエンザ、RSV)、真菌(カンジダ)、微生物バイオフィルム。 免疫調節活性 細菌性リポ多糖(LPS)およびリポテイコ酸の結合と中和、ホルミルペプチド受容体様1(FPRL1/FPR2)を介した好中球/単球/T細胞/肥満細胞の走化性、TLRシグナル伝達の調節、LPS誘発性サイトカインストームの抑制、内皮細胞におけるFPRL1シグナル伝達を介した血管新生の誘導、および創傷治癒におけるケラチノサイト遊走の刺激が含まれます。LL-37の調節異常は、乾癬(過剰なLL-37が自己DNAと複合体を形成して形質細胞様樹状細胞を活性化する)、アテローム性動脈硬化症、特定のがんの病因に関与しています。LL-37は 承認されていません by the FDA, EMA, MHRA, or any other major regulator for human therapeutic use.
作用機序 — 膜破壊+免疫調節
LL-37 acts through three principal mechanisms documented in published studies:
- 両親媒性αヘリックス挿入による選択的微生物膜破壊 — バルク水溶液中では、LL-37は大部分が構造を持たない状態ですが、陰性に荷電した微生物膜(ホスファチジルグリセロール、カルジオリピン、リポテイコ酸、またはLPSに富む)と接触すると、迅速に両親媒性αヘリックスに折り畳まれます。陽イオン面が陰イオン性の膜表面と相互作用し、疎水面が脂質二重層に挿入されます。ペプチド対脂質比が閾値に達すると、これによりトロイダル型ポアまたは「カーペット」様の膜崩壊が引き起こされ、微生物細胞が脱分極し、必須の膜間勾配が破壊されます。哺乳類の細胞膜は、外側リーフレットが双性イオン性(ホスファチジルコリン、スフィンゴミエリン)であり、コレステロールが存在することで保護されており、これにより広範に細胞毒性を持つ界面活性剤と区別されるある程度の微生物選択性がもたらされます。
- LPS中和およびTLR4経路調節 — LL-37 binds directly to bacterial lipopolysaccharide (LPS) with high affinity, sequestering it from the TLR4 / MD-2 / CD14 receptor complex. This blocks LPS-driven NF-κB activation, reduces downstream TNF-α / IL-6 / IL-1β release, and protects host tissue from sepsis-like cytokine storms during severe Gram-negative infections. The same property makes LL-37 a tool for dissecting LPS-driven signalling.
- FPRL1(ホルミルペプチド受容体様1)を介した免疫調節と下流シグナル伝達 — LL-37は、自然免疫エフェクター細胞に広く発現するGタンパク質共役受容体であるFPRL1(FPR2)に結合することで、好中球、単球、T細胞に対する化学誘引物質として作用します。同じ受容体が内皮細胞上でLL-37の血管新生促進作用を媒介し、内皮細胞の増殖、遊走、管形成を刺激します。創傷再上皮化時のケラチノサイト遊走もFPRL1依存性です。さらに、このペプチドはマクロファージ上のプリン受容体P2X7にも作用し、インフラマソーム調節に寄与します。
LL-37の生物学における際立った特徴は、 “剣と盾”のバランス: at low concentrations the peptide is dominantly immunomodulatory and tissue-protective, while at high local concentrations the direct membrane-disruptive activity dominates. This concentration-dependent functional switching is one reason why LL-37 has therapeutic-studies interest across both antimicrobial and wound-healing indications, and why detailed dose-response characterisation is critical in any in-vitro or in-vivo protocol.
Published Evidence
LL-37 is used in clinical contexts that investigate:
- Antimicrobial-resistance studies — MRSA、ESBL産生腸内細菌科細菌、カルバペネム耐性菌、バイオフィルム関連病原菌に対する広域最小発育阻止濃度(MIC)パネル;AMP開発パイプラインのベンチマーキング
- Biofilm studies — バイオフィルム予防アッセイ、確立されたバイオフィルム破壊アッセイに対する P. aeruginosa, S. aureus, Rosu HDL K. pneumoniae — important in cystic-fibrosis and chronic-wound contexts
- LPS / sepsis studies — LPS中和アッセイ、TLR4シグナル伝達解析、敗血症性ショックのサイトカインストームモデル
- Wound-healing and skin studies — keratinocyte migration assays, dermal-fibroblast and endothelial wound-closure models; one of the primary peptides in cutaneous wound-healing studies
- Psoriasis pathogenesis studies — LL-37 / 自己DNA / 形質細胞様樹状細胞軸の解析(LL-37は乾癬皮膚で過剰発現し、自己DNAと複合体を形成してpDCのTLR9を介して免疫寛容を破綻させる)
- Atherosclerosis studies — プラークマクロファージ内のLL-37、酸化LDLとの相互作用、血管炎症モデル
- Oncology — 腫瘍タイプに応じた逆説的な腫瘍促進作用と抗腫瘍作用(LL-37は一部のがんではFPRL1を介して増殖促進的に作用し、他のがんでは腫瘍細胞の直接的な膜破壊を介して抗腫瘍的に作用する)
- Innate-immunity mechanistic studies — FPRL1シグナル伝達、P2X7調節、好中球細胞外トラップ(NET)の生物学、ビタミンDを介したCAMP誘導
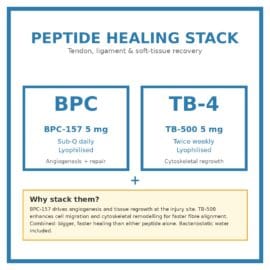
For broader context on innate-immunity and host-defense peptide studies, see KPV (α-MSH由来の抗炎症トリペプチド)、, BPC-157 (多経路組織修復ペンタデカペプチド)、および TB-500 (チモシンベータ4断片、幅広い組織修復)。完全版を見る ペプチドカタログ 化合物選択のために。
利用可能な力価と濃度
MedsBase stocks LL-37 in 5 mg lyophilized vials. Available in 10-vial, 20-vial, or 30-vial pack formats with full reconstitution guidance:
| バイアル力価 | 代表的な使用例 | パックサイズ |
|---|---|---|
| 5 mg | Standard strength — multi-week MIC panels, biofilm assays, wound-healing experiments, LPS-neutralisation assays, immunomodulation dose-response work | 10、20、または30バイアル |
LL-37 is supplied as the unmodified linear 37-mer free-acid form (no acylation, no PEGylation, no disulfide bridge). The peptide is sensitive to plastic adsorption — users should use low-binding tubes for stock storage and dilution. Working concentrations in published assays range from ~0.5 µg/mL in chemotaxis assays up to ~50 µg/mL in direct-killing antimicrobial assays.
比較方法 — LL-37対KPV
LL-37と KPV are both used in innate-immunity studies but operate at completely different scales and target different machinery. LL-37 is a full 37-residue host-defense peptide combining direct antimicrobial membrane disruption with FPRL1-mediated immunomodulation. KPV (Lysine-Proline-Valine) is a 3-residue C-terminal fragment of α-melanocyte-stimulating hormone (α-MSH) that acts as a focused anti-inflammatory and modest antimicrobial peptide through melanocortin-receptor pathway modulation.
| 評価項目 | LL-37 | KPV |
|---|---|---|
| 由来 | ヒトカテリシジンhCAP-18(CAMP遺伝子)のC末端 | α-メラノサイト刺激ホルモン(α-MSH)のC末端 |
| アミノ酸数 | 37アミノ酸 | 3アミノ酸 |
| 主な作用機序 | 両親媒性α-ヘリックス膜破壊 + FPRL1免疫調節 | メラノコルチン経路を介した抗炎症シグナル伝達(NF-κB抑制) |
| 抗菌スペクトル | 広域 — グラム陽性菌、グラム陰性菌、エンベロープウイルス、真菌、バイオフィルム | 狭域 — 主にグラム陽性菌;LL-37よりも数桁弱い |
| 抗炎症作用 | 強力(LPS中和作用、サイトカイン調節作用) | Strong (canonical anti-inflammatory studies tripeptide) |
| 正味電荷 | +6(高いカチオン性) | +1 |
| 膜中での構造 | 両親媒性α-ヘリックス | 明確な二次構造なし(短い線状モチーフ) |
| 最も研究されている適応症 | 抗菌薬耐性、創傷治癒、乾癬 | IBD/大腸炎モデル、腸の炎症、アトピー性皮膚炎 |
For studies focused on broad-spectrum antimicrobial activity, biofilm disruption, or membrane-pore mechanisms, LL-37 is the canonical reference peptide. For studies focused on melanocortin-pathway anti-inflammatory signalling at the cellular level, KPV は、より選択的なツールです。参照: BPC-157 for tissue-repair-focused anti-inflammatory studies and TB-500 広範な組織修復のベンチマーク用。
保管方法と再溶解
再溶解前: 凍結乾燥バイアルは、短期使用の作業用ストックとして、元の包装のまま2~8℃で冷蔵保存してください。長期保管には、未開封のバイアルを-20℃で冷凍保存してください。凍結乾燥されたLL-37は、冷蔵で最大24ヶ月、-20℃で最大36ヶ月安定です。凍結乾燥粉末の凍結融解サイクルは避けてください。すべてのカチオン性抗菌ペプチドと同様に、LL-37は プラスチック吸着 — 標準的なポリプロピレンチューブへのわずかな吸着でも、用量反応データに影響を及ぼす可能性があります。低吸着チューブ(シリコン処理ガラス、Protein LoBind、またはウシ血清アルブミンでプレコートしたポリプロピレン)を、保存液の保管や低タンパク質アッセイバッファーでの段階希釈に使用してください。 再溶解手順: バイアルの側壁に沿って静菌水を注入してください(凍結乾燥ケーキに直接かけないでください)。5 mgバイアルの場合、静菌水1.0 mLで5 mg/mLの作業濃度が得られます。2.0 mLでは2.5 mg/mLの作業ストックが得られます。静かに旋回させてください—激しくボルテックスしないでください。泡立ちにより空気が入り、ヘリックス折りたたみが乱れる可能性があります。粉末が完全に溶解するまで(通常1~2分)待ってから抜き取ってください。静菌剤に感受性の高い用途(細胞培養実験)では、滅菌水または0.01%酢酸で溶解してください。溶解後は、バイアルを2~8 °Cで保存し、14~28日以内に使用してください。光から保護してください。濁り、粒子、または色の変化が現れた場合は廃棄してください。
よくある質問
LL-37はカテリシジンと同じですか?
LL-37は、ヒトカテリシジン(不活性前駆体hCAP-18、CAMP遺伝子にコードされる)から放出される活性型C末端37アミノ酸ペプチドです。カテリシジンはファミリー名であり、多くの脊椎動物種にわたって存在します。LL-37は活性型ヒトカテリシジンペプチドの固有の名称です。文献で見かけるかもしれない他の名称—CAP-18およびFALL-39—は、異なる歴史的命名規則による同じ分子を指します。
LL-37はディフェンシンとどのように異なりますか?
LL-37とディフェンシン(α-ディフェンシンおよびβ-ディフェンシン)は、哺乳類の抗菌ペプチドの2つの主要ファミリーです。ディフェンシンはより小さく、システインが豊富で、3つのジスルフィド結合で安定化されたβシート構造をとります。LL-37は、膜環境で両親媒性α-ヘリックスをとるより長い直鎖状カチオンペプチドであり、ジスルフィド架橋はありません。両クラスは広範な抗菌活性と免疫調節作用を共有しますが、構造的に異なるメカニズムで機能します。
抗菌アッセイにおけるLL-37の典型的な有効濃度はどれくらいですか?
感受性グラム陽性菌およびグラム陰性菌に対するLL-37の公表最小発育阻止濃度(MIC)は、菌株、アッセイバッファーのイオン強度、バイオフィルムか浮遊系かなどの形式によって、一般的に1~32 µg/mLの範囲です。高濃度(50~100 µg/mL)は、直接的な膜破壊試験やバイオフィルム撲滅アッセイによく使用されます。免疫調節性の読み取り(走化性、LPS中和、ケラチノサイト遊走)では、通常はるかに低い濃度(0.5~10 µg/mL)が使用されます。ご自身のプロトコールに適した用量範囲は、査読付き文献から決定してください。
LL-37においてプラスチックへの吸着が問題となる理由は何ですか?
LL-37のようなカチオン性抗菌ペプチド(AMP)は、特に低タンパク質バッファー中で、標準的なポリプロピレンやポリスチレン製の実験器具表面に著しく吸着する可能性があります。低濃度のカチオン性ペプチドでは、1回のチューブ移し替えで30~80%の損失が文献で報告されています。これは、特にMIC測定の希釈系列において、活性の体系的な過小評価を引き起こす可能性があります。低吸着チューブを使用する、BSAでチューブをプレコートする、またはアッセイの読み取りに応じて希釈バッファーにキャリアタンパク質を含めるなどの対策をとってください。
LL-37はどのようにして微生物膜と哺乳類膜を区別するのですか?
選択性は膜組成に由来します。微生物膜(特にグラム陰性菌の外膜やグラム陽性菌の細胞質膜)は、負に帯電した脂質(ホスファチジルグリセロール、カルジオリピン、LPS、リポテイコ酸)が豊富です。哺乳類の細胞質膜は、双性イオン性の外層(ホスファチジルコリン、スフィンゴミエリン)と、二重層を安定化させる高いコレステロール含量を持っています。LL-37のカチオン面は、負に帯電した微生物表面に優先的に結合します。コレステロールで安定化された哺乳類膜は、挿入に対する感受性がはるかに低くなります。選択性は濃度依存的であり、非常に高い局所濃度ではLL-37は哺乳類細胞に対しても細胞毒性を示す可能性があります。
LL-37機能の「剣対盾」モデルとは何ですか?
The model describes the concentration-dependent functional switching of LL-37: at low concentrations (<5 µg/mL) the peptide is dominantly immunomodulatory and tissue-protective — chemotactic, pro-angiogenic, LPS-neutralising. At high concentrations (>20 µg/mL) the direct membrane-disruptive antimicrobial activity dominates. This dual nature underlies LL-37’s diverse roles in host defense and is one of the reasons careful dose-response characterisation is essential in any in-vitro or in-vivo context.
LL-37と乾癬の関連性は何ですか?
LL-37 is markedly overexpressed in psoriatic skin lesions and binds avidly to self-DNA and self-RNA released from damaged keratinocytes. These LL-37 / self-nucleic-acid complexes activate plasmacytoid dendritic cells via TLR9 (DNA) and TLR7 (RNA), driving the IFN-α-rich autoimmune-like inflammation that characterises psoriasis. Targeting the LL-37 / pDC / TLR axis is an active area of psoriasis pharmacology studies.
なぜ一部のがん研究は腫瘍促進性で、他の研究は抗腫瘍性なのですか?
LL-37には、がんに対する状況依存的な効果が報告されています。一部の腫瘍タイプ(卵巣、乳房、肺、大腸)では、LL-37の高発現が予後の悪化と相関しています。これはFPRL1を介した増殖促進性および血管新生促進性のシグナル伝達によるものと考えられます。その他のタイプ(胃がん、一部のモデルでの黒色腫)では、LL-37は腫瘍細胞に対して直接的な膜破壊性の細胞傷害効果を示し、抗腫瘍活性はより弱いです。正味の効果は、腫瘍の種類、局所濃度、FPRL1の発現、腫瘍微小環境の構成に依存します。
ペプチドをもっと見る
最近のMedsBaseでの注文数に基づくランキング — このカテゴリーで他のお客様が選んでいる商品です。
| 含量 | 5 mg |
|---|---|
| 数量 | 10バイアル、20バイアル、30バイアル |
 LL-37(カテリシジン抗菌ペプチド)
Q&A
LL-37(カテリシジン抗菌ペプチド)
関連商品
レビュー
まだレビューはありません